Modelos de disparos neuronais
Modelos de disparos neuronais são modelos matemáticos que descrevem os padrões com os quais potenciais de ação são iniciados e propagados nos neurônios. Tais modelos compreendem descrições matemáticas das propriedades de células no sistema nervoso que possuem potenciais elétricos e, grosso modo, trata-se de descrições em linguagem matemática da comunicação entre os neurônios. Esses modelos são utilizados nos estudos da dinâmica de redes neurais e fundamentam a neurociência computacional e a neuromatemática. Variados modelos são utilizados em pesquisas de neurociência, com diversas implicações no modo como as redes neurais são descritas e simuladas.[1]

A quantidade de modelos de disparos neuronais é alta.[2] Essa situação está em parte associada a características de diferentes experimentos neurocientíficos. De modo geral, pode-se distinguir duas grandes famílias de modelos: os determinísticos e os escolásticos. Abaixo, um panorama é feito de alguns desses modelos.
Integra-e-dispara
O modelo integra-e-dispara (em inglês, integrate-and-fire ou I&F) é um dos mais utilizados pela neurociência computacional. É um dos primeiros modelos de disparos neuronais criados, tendo sido proposto por Louis Lapicque em 1907.[3] Não é um modelo explícito, isto é, não descreve o mecanismo que gera o potencial de ação de um neurônio. Pode ser descrito como

sendo a corrente de entrada e o potencial da membrana. A fórmula é, portanto, uma derivada do tempo da lei da capacitância . Quando uma corrente é aplicada, a voltagem da membrana aumenta até atingir uma constante , quanto então o neurônio dispara um spike como uma função delta de Dirac, e a voltagem retorna ao valor de potencial de repouso. Assim, a frequência de disparo cresce linearmente sem restrições com o aumento da corrente.


Integra-e-dispara com adaptação
Para lidar com a uni-dimensionalidade do IF, é possível adicionar uma segunda equação linear descrevendo uma dinâmica de ativação para uma corrente de potássio de limite alto para permitir uma adaptação de frequência de disparos no modelo. Assim, com

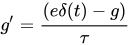
a cada disparo aumenta-se o valor de ativação de K, via função delta de Dirac .


Integra-e-dispara-ou-rajada
Outra melhoria feita a partir do modelo inicial de integra-e-dispara é o modelo integra-e-dispara-ou-rajada ou I&FB:


sendo , , , e parâmetros para descrever a dinâmica da corrente canal de cálcio T, a inativação dessa corrente, e uma função degrau de Heaviside.


A segunda variável permite modelar rajadas, mas faz com que sejam necessárias entre 9 e 13 operações para a simulação de 1 ms, contra 4 do modelo IF simples.
Ressoa-e-dispara
Enquanto o modelo integra-e-dispara, base dos três anteriores é uni-dimensional, o modelo ressoa-e-dispara é uma forma análoga em versão bi-dimensional (2-D):


sendo , , e parâmetros, o potencial de membrana, e uma função arbitrária que descreve o reinicio do sistema após o disparo.


Integra-e-dispara quadrático
O modelo integra-e-dispara quadrático (ou QIF) é uma alternativa aos modelos de integra-e-dispara com vazamento. Em Latham et al, é formulado como


onde e são os valores de repouso e limite do potencial de membrana.[4]


Com este modelo, são necessárias 10 operações para simular 1 ms, e, de acordo com Izhikevich, “este deve ser o modelo de escolha quando alguém simula redes de integradores em grande escala”.[5]
Modelo de disparo de Izhikevich
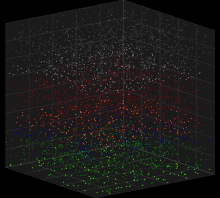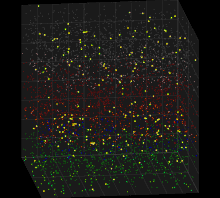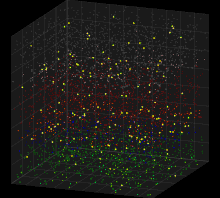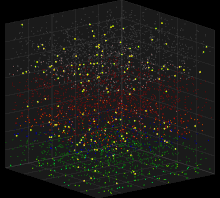
O matemático Eugene Izhikevich também propôs um modelo próprio,[6] que pode ser escrito como


sendo o potencial de membrana do neurônio em questão e a variável de recuperação da membrana. Depois que o disparo atinge seu máximo a mV, entra em ação o cálculo de reinício pós-disparo, elaborado da seguinte forma:


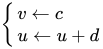
Com o modelo de Izhikevich é possível simular todos os tipos de neurônios corticais conhecidos, e são necessárias 13 operações para 1 ms do modelo.
FitzHugh-Nagumo

O modelo FitzHugh-Nagumo[7] difere pois pode simular a dinâmica de disparo de diversos neurônios ressonadores. Pode ser descrito como


É um processo mais complexo, com cada passo do modelo utilizando um período bastante reduzido de tempo. Para cada 0,25 ms são necessárias 18 operações, totalizando 72 em 1 ms.
Hindmarsh-Rose
O modelo Hindmarsh-Rose[8] simula neurônios talâmicos, e depende da seleção de funções específicas , e , da seguinte forma:


O problema desse modelo é justamente como encontrar as funções corretas para simular os diferentes tipos de neurônios. Além disso, assim como o modelo de FitzHugh-Nagumo, ele precisa utilizar um tempo reduzido.
Morris-Lecar
O modelo Morris-Lecar[9] surgiu como um modelo de duas dimensões para oscilações na fibra muscular de crustáceos. Possui uma equação para potencial de membrana com ativação instantânea para corrente de cálcio e uma gradual para a de potássio:


onde

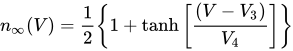
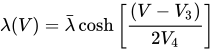
sendo a capacitância da membrana, a corrente aplicada, , e o vazamento e a condutância de íons de cálcio e potássio pelas membranas do canal, , e os potenciais de equilíbrio dos canais de íon, e , , e parâmetros de ajuste para o estado estacionário e constante de tempo. As variáveis aqui são o potencial de membrana e a variável de recuperação , que indica a probabilidade de o canal de íon potássio estar conduzindo corrente. Por envolver funções hiperbólicas, são necessárias aproximadamente 60 operações para cada 0.1 ms, ou 600 para uma simulação total de 1 ms.


Neurônios polinomiais de Wilson
Outra forma complexa de modelar neurônios corticais é utilizando polinômios. A sugestão de Hugh R. Wilson utiliza quatro equações polinomiais para exibir as propriedades neurocomputacionais desejadas. Segundo o próprio Wilson, o modelo “deve ser útil para simulações de funções neocorticais em comparação com modelos menos realistas como os de FitzHugh-Nagumo ou Hindmarsh-Rose”.[10] O período sugerido no modelo é de 0,1 ms, mas de acordo com Izhikevich, “pode ser elevado até 0,25 ms sem perda significativa de precisão ou distorções notáveis na forma do potencial de ação”.
Hodgkin-Huxley
O modelo Hodgkin-Huxley,[11] ou modelo baseado em condutância, é um modelo matemático que descreve como potenciais de ação nos neurônios são iniciados e propagados. É um conjunto de equações diferenciais não-lineares que se aproxima das características elétricas das células excitáveis, tais como neurônios e miócitos cardíacos, e, portanto, é um modelo de tempo contínuo. Alan Lloyd Hodgkin e Andrew Huxley descreveram o modelo em 1952 para explicar os mecanismos iônicos subjacentes à iniciação e propagação dos potenciais de ação no axônio gigante de lula.[12] É um dos principais modelos e um dos grandes avanços da biofísica no século XX, e rendeu aos seus autores, o prêmio Nobel de Fisiologia ou Medicina de 1963.
É composto por uma série de quatro equações diferenciais não lineares e dez parâmetros descrevendo o potencial de membrana, ativação de correntes de sódio e potássio e inativação da corrente de Na. O que foi notado é que num primeiro momento, a relação tensão-corrente, desta vez generalizada para incluir várias correntes dependentes de voltagem:
- .

Cada corrente é dada pela lei de Ohm como

onde g(t,V) é a resistência elétrica, ou resistência inversa, que pode ser expandida em termos da sua média constante ḡ e as frações de ativação e inativação m e h, respectivamente, que determinam quantos íons podem fluir através de canais de membrana disponíveis. Tal expansão é dada por:
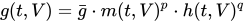
e as frações seguem a cinética de primeira ordem:

com uma dinâmica similar o h, onde se pode usar tanto τ e m∞ ou α e β para definir os "gate fractions"
Dessa forma, o que resta é investigar individualmente o que cada corrente quer incluir. Normalmente, elas compreendem a adição de Ca2+ e Na+ e diversas variedades de K+, incluindo uma corrente de "vazamento".
Galves-Löcherbach

O modelo Galves-Löcherbach[13] é uma nova classe de modelo, com características estocásticas, interativas e evolutivas, no qual cada componente pode assumir dois valores, indicando a existência ou não de um disparo em cada momento. A probabilidade de disparos futuros é dependente da evolução total do sistema desde o último disparo.
Referências
- Gerstner, W.; Kistler, W. M. (2002). Spiking Neuron Models; Single Neurons, Populations, Plasticity. Cambridge: Cambridge University Press
- E. Izhikevich, “Which Model to Use for Cortical Spiking Neurons?,” IEEE Transactions on Neural Networks, vol. 15, n. 5, 2004.
- Abbott, L.F. (1999). «Lapique's introduction of the integrate-and-fire model neuron (1907)» (PDF). Brain Research Bulletin. 50 (5/6): 303–304. PMID 10643408. doi:10.1016/S0361-9230(99)00161-6. Consultado em 24 de novembro de 2007. Arquivado do original (PDF) em 13 de junho de 2007
- E. M. Izhikevich. “Class 1 neural excitability, conventional synapses, weakly connected networks, and mathematical foundations of pulse-coupled models”. IEEE Trans. Neural Networks, vol. 10, pp. 499–507, maio de 1999.
- E. M. Izhikevich. “Which Model to Use for Cortical Spiking Neurons?”. IEEE Trans. Neural Networks, vol. 15, pp. 1063-1070, setembro de 2004
- E. M. Izhikevich, “Simple model of spiking neurons,” IEEE Trans. Neural Networks, vol. 14, pp. 1569–1572, novembro de 2003.
- R. FitzHugh, “Impulses and physiological states in models of nerve membrane,” Biophys. J., vol. 1, pp. 445–466, 1961.
- R. M. Rose e J. L. Hindmarsh, “The assembly of ionic currents in a thalamic neuron. I The three-dimensional model,” Proc. R. Soc. Lond. B, vol. 237, pp. 267–288, 1989.
- C. Morris e H. Lecar, “Voltage oscillations in the barnacle giant muscle fiber,” Biophys. J., vol. 35, pp. 193–213, 1981.
- H. R. Wilson, “Simplified dynamics of human and mammalian neocortical neurons,” J. Theor. Biol., vol. 200, pp. 375–388, 1999.
- A. L. Hodgkin e A. F. Huxley, “A quantitative description of membrane current and application to conduction and excitation in nerve,” J. Physiol., vol. 117, pp. 500–544, 1954.
- Hodgkin, A. L.; Huxley, A. F. (1952). «A quantitative description of membrane current and its application to conduction and excitation in nerve». The Journal of Physiology. 117 (4): 500–544. PMC 1392413
 . PMID 12991237. doi:10.1113/jphysiol.1952.sp004764
- A. Galves, E. Löcherbach, "Infinite Systems of Interacting Chains with Memory of Variable Length — A Stochastic Model for Biological Neural Nets". Journal of Statistical Physics, vol. 151, n. 5, pp. 896-921, junho de 2013