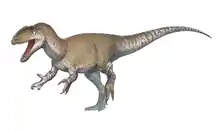Majungassauro
O Majungassauro (original Majungasaurus)[1] foi um gênero de dinossauro terópode de porte grande que habitou a ilha de Madagáscar há entre 70 a 66 milhões de anos. A espécie-tipo é denominada Majungasaurus crenatissimus. Este dinossauro também é chamado de Majungatholus, um nome que é considerado um sinônimo júnior de Majungasaurus.
| Majungassauro | |
|---|---|
 | |
| Esqueleto montado, Universidade Stony Brook | |
Classificação científica  | |
| Reino: | Animalia |
| Filo: | Chordata |
| Clado: | Dinosauria |
| Clado: | Saurischia |
| Clado: | Theropoda |
| Clado: | †Abelisauria |
| Família: | †Abelisauridae |
| Subfamília: | †Majungasaurinae |
| Gênero: | †Majungasaurus Lavocat, 1955 |
| Espécies: | †M. crenatissimus |
| Nome binomial | |
| †Majungasaurus crenatissimus (Depéret, 1896) [originalmente Megalosaurus] | |
| Sinónimos | |
| |
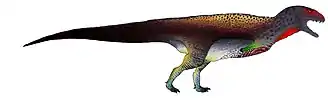
Como outros abelissaurídeos, o Majungasaurus era um predador bípede com um focinho curto. Embora os membros anteriores não sejam completamente conhecidos, eles eram muito curtos, enquanto os membros posteriores eram mais longos e muito atarracados. Ele pode ser distinguido de outros abelissaurídeos por seu crânio mais largo, a textura muito áspera e o osso espesso no topo do focinho e o único chifre arredondado no teto do crânio, que originalmente foi confundido com a cúpula de um paquicefalossauro. Ele também tinha mais dentes nas mandíbulas superior e inferior do que a maioria dos abelissaurídeos.
Conhecido por vários crânios bem preservados e material esquelético abundante, o Majungasaurus tornou-se recentemente um dos dinossauros terópodes mais bem estudados do Hemisfério Sul. Parece estar mais intimamente relacionado aos abelissaurídeos da Índia do que da América do Sul ou da África continental, fato que tem importantes implicações biogeográficas. O Majungassauro era o predador de ponta em seu ecossistema, predando principalmente saurópodes como o Rapetosaurus, e também é um dos poucos dinossauros para os quais há evidências diretas de canibalismo.
Descoberta

O paleontólogo francês Charles Depéret descreveu os primeiros restos de terópodes do noroeste de Madagascar em 1896. Estes incluíam dois dentes, uma garra e algumas vértebras descobertas ao longo do rio Betsiboka por um oficial do exército francês e depositadas na coleção do que hoje é a Université Claude-Bernard-Lyon-I. Depéret referiu esses fósseis ao gênero Megalosaurus, que na época era um táxon de lixeira contendo qualquer número de grandes terópodes não relacionados, como a nova espécie M. crenatissimus.[2] Este nome é derivado da palavra latina crenatus ("entalhado") e do sufixo -issimus ("mais"), em referência às numerosas serrilhas nas bordas frontal e traseira dos dentes.[3] Mais tarde, Depéret transferiu a espécie para o gênero norte-americano Dryptosaurus, outro táxon pouco conhecido.[4]
Numerosos restos fragmentários da província de Mahajanga no noroeste de Madagascar foram recuperados por colecionadores franceses nos próximos 100 anos, muitos dos quais foram depositados no Muséum National d'Histoire Naturelle em Paris.[3] Em 1955, René Lavocat descreveu um terópode dentário (MNHN.MAJ 1) com dentes da Formação Maevarano na mesma região onde o material original foi encontrado. Os dentes combinavam com os descritos pela primeira vez por Depéret, mas o osso da mandíbula fortemente curvado era muito diferente do Megalosaurus e do Dryptosaurus. Com base neste dentário, Lavocat criou o novo gênero Majungasaurus, usando uma grafia mais antiga de Mahajanga, bem como a palavra grega σαυρος sauros (que significa "lagarto").[5] Hans-Dieter Sues e Philippe Taquet descreveram um fragmento de crânio em forma de cúpula (MNHN.MAJ 4) como um novo gênero de paquicefalossauro (Majungatholus atopus) em 1979. Este foi o primeiro relato de um paquicefalossauro no Hemisfério Sul.[6]

Em 1993, cientistas da Universidade Estadual de Nova York em Stony Brook e da Universidade de Antananarivo iniciaram o Projeto da Bacia Mahajanga, uma série de expedições para examinar os fósseis e a geologia dos sedimentos do Cretáceo Superior perto da vila de Berivotra, na província de Mahajanga.[3] Entre esses cientistas estava o paleontólogo David W. Krause, de Stony Brook. A primeira expedição encontrou centenas de dentes de terópodes idênticos aos do Majungasaurus, alguns dos quais foram anexados a uma pré-maxila isolada que foi descrita em 1996.[7] As sete expedições seguintes revelariam dezenas de milhares de fósseis, muitos dos quais pertenciam a espécies novas para a ciência. O Projeto da Bacia de Mahajanga reivindica crédito por quintuplicar a diversidade conhecida de táxons fósseis na região.[3]

O trabalho de campo em 1996 revelou um crânio de terópode espetacularmente completo preservado em detalhes requintados (FMNH PR 2100). No topo deste crânio havia um inchaço em forma de cúpula quase idêntico ao descrito por Sues e Taquet como Majungatholus atopus. Majungatholus foi redescrita como um abelissaurídeo em vez de um paquicefalossauro em 1998. Embora o nome Majungasaurus crenatissimus fosse mais antigo que Majungatholus atopus, os autores julgaram o tipo dentário de Majungasaurus muito fragmentário para atribuir com segurança à mesma espécie que o crânio.[8] Mais trabalho de campo na década seguinte revelou uma série de crânios menos completos, bem como dezenas de esqueletos parciais de indivíduos que variam de juvenis a adultos. Os membros do projeto também coletaram centenas de ossos isolados e milhares de dentes de Majungasaurus. Juntos, esses restos representam quase todos os ossos do esqueleto, embora a maioria dos membros anteriores, a maior parte da pelve e a ponta da cauda ainda sejam desconhecidas.[3] Este trabalho de campo culminou em uma monografia de 2007 composta por sete artigos científicos sobre todos os aspectos da biologia do animal, publicados na Society of Vertebrate Paleontology Memoirs. Os artigos estão em inglês, embora cada um tenha um resumo escrito em malgaxe.[9] Neste volume, o dentista descrito por Lavocat foi reavaliado e determinado como diagnóstico para esta espécie. Portanto, o nome Majungatholus foi substituído pelo nome mais antigo Majungasaurus. Embora a monografia seja abrangente, os editores observaram que ela descreve apenas o material recuperado de 1993 a 2001. Uma quantidade significativa de espécimes, alguns muito completos, foram escavados em 2003 e 2005 e aguardam preparação e descrição em publicações futuras.[3] O dentista tornou-se o espécime do neótipo após uma petição de 2009 ao ICZN.[10][11]
Descrição
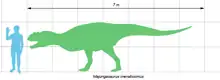
Majungasaurus era um terópode de tamanho médio que normalmente media 6-7 metros de comprimento, incluindo sua cauda.[3] Restos fragmentários de indivíduos maiores indicam que alguns adultos atingiram comprimentos de mais de 8 metros.[12] Um estudo alométrico em 2016 descobriu que tinha 5,6 metros de comprimento.[13] Sampson e Witmer estimaram um peso médio para um Majungasaurus adulto de 1.100 kg.[12] O espécime em que se basearam (FMNH PR 2100) não foi o maior descoberto. Espécimes maiores de Majungasaurus crenatissimus poderiam ter sido semelhantes em tamanho ao seu parente Carnotaurus,[12] que foi estimado em 1.500 kg.[14]
O crânio do Majungasaurus é excepcionalmente conhecido em comparação com a maioria dos terópodes e geralmente semelhante ao de outros abelissaurídeos. Como outros crânios de abelissaurídeos, seu comprimento era proporcionalmente curto para sua altura, embora não tão curto quanto em Carnotaurus. Os crânios de indivíduos grandes mediam de 60 a 70 centímetros de comprimento. A pré-maxila alta (osso da mandíbula superior mais frontal), que tornava a ponta do focinho muito romba, também era típica da família. No entanto, o crânio do Majungasaurus era marcadamente mais largo do que em outros abelissaurídeos. Todos os abelissaurídeos tinham uma textura áspera e esculpida nas faces externas dos ossos do crânio, e o Majungassauro não foi exceção. Isso foi levado ao extremo nos ossos nasais do Majungasaurus, que eram extremamente espessos e fundidos, com uma crista central baixa correndo ao longo da metade do osso mais próxima das narinas. Um chifre distinto em forma de cúpula se projetava dos ossos frontais fundidos no topo do crânio também. Em vida, essas estruturas teriam sido cobertas com algum tipo de tegumento, possivelmente feito de queratina. A tomografia computadorizada do crânio mostra que tanto a estrutura nasal quanto o corno frontal continham cavidades sinusais ocas, talvez para reduzir o peso.[12] Os dentes eram típicos dos abelissaurídeos por terem coroas curtas, embora o Majungasaurus tivesse dezessete dentes tanto na maxila do maxilar superior quanto no dentário do maxilar inferior, mais do que em qualquer outro abelissaurídeo, exceto Rugops.[15]
Como outros abelissaurídeos, os membros posteriores eram atarracados e curtos em comparação com o comprimento do corpo. A tíbia (osso inferior da perna) do Majungasaurus era ainda mais atarracada do que a de seu parente Carnotaurus, com uma crista proeminente no joelho. O astrágalo e o calcâneo (ossos do tornozelo) foram fundidos, e os pés tinham três dedos funcionais, com um primeiro dedo menor que não entrou em contato com o solo.[16]
Classificação
Majungasaurus é classificado como um membro do clado de terópodes Abelisauridae, que é considerado uma família na taxonomia de Lineu. Junto com a família Noasauridae, os abelissaurídeos estão incluídos na superfamília Abelisauroidea, que por sua vez é uma subdivisão da infraordem Ceratosauria.[3][17] Os abelissaurídeos são conhecidos por seus crânios altos com focinhos rombos, extensa escultura nas superfícies externas dos ossos faciais (convergente com carcharodontossaurídeos), membros anteriores muito reduzidos (atrofiados) (convergente com tiranossaurídeos) e proporções atarracadas dos membros posteriores, entre outras características.[18]
Tal como acontece com muitas famílias de dinossauros, a sistemática (relações evolutivas) dentro da família Abelisauridae é confusa. Vários estudos cladísticos indicaram que o Majungasaurus compartilha uma relação próxima com o Carnotaurus da América do Sul,[17][18] enquanto outros não conseguiram colocá-lo firmemente na filogenia.[19] A análise mais recente, usando as informações mais completas, considerou Majungasaurus como parte de um clado com Rajasaurus e Indosaurus da Índia, mas excluindo gêneros sul-americanos como Carnotaurus, Ilokelesia, Ekrixinatosaurus, Aucasaurus e Abelisaurus, bem como Rugops da África continental. Isso deixa em aberto a possibilidade de clados separados de abelissaurídeos no oeste e leste de Gondwana.[3]
| Majungasaurinae |
| ||||||||||||||||||


Paleobiologia

Majungasaurus é talvez mais distinto por sua ornamentação de crânio, incluindo as nasais inchadas e fundidas e o chifre frontal. Outros ceratossauros, incluindo Carnotaurus, Rajasaurus e o próprio Ceratosaurus, tinham cristas na cabeça. Essas estruturas provavelmente desempenharam um papel na competição intraespecífica, embora sua função exata nesse contexto seja desconhecida. A cavidade oca dentro do chifre frontal do Majungasaurus teria enfraquecido a estrutura e provavelmente impedido seu uso em combate físico direto, embora o chifre possa ter servido a um propósito de exibição.[18] Embora haja variação na ornamentação dos indivíduos Majungasaurus, não há evidências de dimorfismo sexual.[12]
Alimentação

Os cientistas sugeriram que a forma única do crânio do Majungasaurus e outros abelissaurídeos indicam hábitos predatórios diferentes dos outros terópodes. Enquanto a maioria dos terópodes era caracterizada por crânios longos e baixos de largura estreita, os crânios dos abelissaurídeos eram mais altos e largos, e muitas vezes também mais curtos.[12] Os crânios estreitos de outros terópodes estavam bem equipados para suportar o estresse vertical de uma mordida poderosa, mas não tão bons em resistir à torção.[20] Em comparação com os predadores mamíferos modernos, a maioria dos terópodes pode ter usado uma estratégia semelhante em alguns aspectos à dos canídeos de focinho longo e estreito, com a entrega de muitas mordidas enfraquecendo a presa.[21]
Abelissaurídeos, especialmente Majungasaurus, podem ter sido adaptados para uma estratégia de alimentação mais semelhante aos felinos modernos, com focinhos curtos e largos, que mordem uma vez e seguram até que a presa seja subjugada. Majungasaurus tinha um focinho ainda mais largo do que outros abelissaurídeos, e outros aspectos de sua anatomia também podem apoiar a hipótese de morder e segurar. O pescoço foi fortalecido, com vértebras robustas, costelas entrelaçadas e tendões ossificados, bem como locais de fixação muscular reforçados nas vértebras e na parte de trás do crânio. Esses músculos teriam sido capazes de manter a cabeça firme, apesar das lutas de suas presas. Os crânios dos abelissaurídeos também foram fortalecidos em muitas áreas por osso mineralizado da pele, criando a textura áspera característica dos ossos. Isso é particularmente verdadeiro para o Majungasaurus, onde os ossos nasais foram fundidos e engrossados para obter força. Por outro lado, a mandíbula inferior do Majungasaurus ostentava uma grande fenestra (abertura) de cada lado, como visto em outros ceratossauros, bem como articulações sinoviais entre certos ossos que permitiam um alto grau de flexibilidade na mandíbula inferior, embora não a extensão observada em cobras. Isso pode ter sido uma adaptação para evitar a fratura da mandíbula inferior ao segurar uma presa em dificuldades. Os dentes da frente do maxilar superior eram mais robustos do que o resto, para fornecer um ponto de ancoragem para a mordida, enquanto a baixa altura da coroa dos dentes do Majungasaurus impedia que eles se quebrassem durante uma luta. Finalmente, ao contrário dos dentes do Allosaurus e da maioria dos outros terópodes, que eram curvados na frente e nas costas, os abelissaurídeos como o Majungasaurus tinham dentes curvados na borda frontal, mas mais retos na borda traseira (cortante). Essa estrutura pode ter servido para evitar o fatiamento e, em vez disso, manter os dentes no lugar ao morder.[12] O exame dos dentes do Majungasaurus indica que o terópode substituiu seus dentes de 2 a 13 vezes mais rápido do que outros terópodes, substituindo todo o conjunto em um período de dois meses. Roer o osso pode ter sido uma razão significativa para uma substituição tão rápida do dente.[22]

Majungasaurus era o maior predador em seu ambiente, enquanto os únicos grandes herbívoros conhecidos na época eram saurópodes como o Rapetosaurus. Os cientistas sugeriram que o Majungasaurus, e talvez outros abelissaurídeos, se especializaram na caça de saurópodes. Adaptações para fortalecer a cabeça e o pescoço para um tipo de ataque de morder e segurar podem ter sido muito úteis contra saurópodes, que seriam animais tremendamente poderosos. Esta hipótese também pode ser apoiada pelas pernas traseiras do Majungasaurus, que eram curtas e atarracadas, em oposição às pernas mais longas e delgadas da maioria dos outros terópodes. Embora o Majungasaurus não se movesse tão rápido quanto outros terópodes de tamanho semelhante, não teria problemas para acompanhar os saurópodes de movimento lento. Os robustos ossos dos membros posteriores sugerem pernas muito poderosas, e seu comprimento mais curto teria rebaixado o centro de gravidade do animal. Assim, o Majungasaurus pode ter sacrificado a velocidade pelo poder.[12] Marcas de dentes de Majungasaurus nos ossos do Rapetosaurus confirmam que ele pelo menos se alimentou desses saurópodes, mesmo que não os tenha matado.[23]
Ontogenia
Majungasaurus, sendo conhecido de muitos espécimes bem preservados de diferentes idades, é bem estudado em relação ao seu crescimento e desenvolvimento. Ao longo da ontogenia, o crânio do Majungasaurus (mais especificamente, o jugal, pós-orbital e quadratojugal) parece ter se tornado mais alto e mais robusto; além disso, os ossos do crânio tornaram-se mais fundidos e as órbitas oculares tornaram-se proporcionalmente menores. Isso indica uma mudança nas preferências alimentares entre jovens e adultos.[24]
A pesquisa de Michael D'Emic et al indica que estava entre os terópodes de crescimento mais lento. Com base em estudos das linhas de crescimento interrompido em vários ossos, verificou-se que o Majungasaurus levou vinte anos para atingir a maturidade, o que pode ter sido resultado do ambiente hostil em que vivia. No entanto, outros abelissaurídeos também apresentaram taxas de crescimento comparativamente lentas.[25]
Paleoecologia

Todos os espécimes de Majungasaurus foram recuperados da Formação Maevarano na província de Mahajanga, no noroeste de Madagascar. A maioria deles, incluindo todo o material mais completo, veio do Membro Anembalemba, embora os dentes do Majungasaurus também tenham sido encontrados no Membro Masorobe subjacente e no Membro Miadana sobrejacente. Embora esses sedimentos não tenham sido datados radiometricamente, evidências de bioestratigrafia e paleomagnetismo sugerem que eles foram depositados durante o estágio Maastrichtiano, que terá durado entre 70 a 66 milhões de anos antes do presente. Os dentes do Majungassauro são encontrados até o final do Maastrichtiano, quando todos os dinossauros não-avianos foram extintos.[26]
Então, como agora, Madagascar era uma ilha, tendo se separado do subcontinente indiano menos de 20 milhões de anos antes. Ele estava se movendo para o norte, mas ainda 10-15° mais ao sul em latitude do que é hoje. O clima predominante na época era o semiárido, com pronunciada sazonalidade de temperatura e pluviosidade. Majungasaurus habitava uma planície costeira de inundação cortada por muitos canais de rios arenosos.[26] Fortes evidências geológicas sugerem a ocorrência de fluxos periódicos de detritos através desses canais no início da estação chuvosa, enterrando as carcaças de organismos mortos durante a estação seca anterior e proporcionando sua preservação excepcional como fósseis.[27] Os níveis do mar na área estavam subindo em todo o Maastrichtiano e continuariam a fazê-lo na época do Paleoceno, então o Majungasaurus também pode ter percorrido ambientes costeiros como planícies de maré. A vizinha Formação Berivotra representa o ambiente marinho contemporâneo.[26]
Referências
- «Dinossauro trocava dentes a cada dois meses, revelam cientistas». Planeta. 29 de novembro de 2019. Consultado em 21 de março de 2022
- Depéret, Charles (1896). «Note sur les Dinosauriens Sauropodes et Théropodes du Crétacé supérieur de Madagascar». Bulletin de la Société Géologique de France (em francês). 21: 176–194
- Krause, David W.; Sampson, Scott D.; Carrano, Matthew T.; O'Connor, Patrick M. (2007). «Overview of the history of discovery, taxonomy, phylogeny, and biogeography of Majungasaurus crenatissimus (Theropoda: Abelisauridae) from the Late Cretaceous of Madagascar». In: Sampson, Scott D.; Krause, David W. Majungasaurus crenatissimus (Theropoda: Abelisauridae) from the Late Cretaceous of Madagascar. Journal of Vertebrate Paleontology. Col: Society of Vertebrate Paleontology Memoir 8. 27. [S.l.: s.n.] pp. 1–20. doi:10.1671/0272-4634(2007)27[1:OOTHOD]2.0.CO;2
- Depéret, Charles; Savornin, Justin. (1928). «La faune de Reptiles et de Poissons albiens de Timimoun (Sahara algérien)» [The fauna of Reptiles and Albian Fish of Timimoun (Algerian Sahara)]. Bulletin de la Société Géologique de France (em francês). 27: 257–265
- Lavocat, René (1955). «Sur une portion de mandibule de Théropode provenant du Crétacé supérieur de Madagascar» [On a portion of Theropod's mandible from the Upper Cretaceous of Madagascar]. Bulletin du Muséum National d'Histoire Naturelle (em francês). 27: 256–259
- Sues, Hans-Dieter; Taquet, Phillipe. (1979). «A pachycephalosaurid dinosaur from Madagascar and a Laurasia−Gondwanaland connection in the Cretaceous». Nature. 279 (5714): 633–635. Bibcode:1979Natur.279..633S. doi:10.1038/279633a0
- Sampson, Scott D.; Krause, David W.; Dodson, Peter; Forster, Catherine A. (1996). «The premaxilla of Majungasaurus (Dinosauria: Theropoda), with implications for Gondwanan paleobiogeography». Journal of Vertebrate Paleontology. 16 (4): 601–605. doi:10.1080/02724634.1996.10011350. Arquivado do original em 27 de setembro de 2007
- Sampson, S. D. (15 de maio de 1998). «Predatory Dinosaur Remains from Madagascar: Implications for the Cretaceous Biogeography of Gondwana». Science. 280 (5366): 1048–1051. Bibcode:1998Sci...280.1048S. PMID 9582112. doi:10.1126/science.280.5366.1048
- Sampson, Scott D; Krause, David W, eds. (2007). «Majungasaurus crenatissimus (Theropoda:Abelisauridae) from the late Cretaceous of Madagascar». Society of Vertebrate Paleontology. Journal of Vertebrate Paleontology. 27 (Supplement 2): 1–184. OCLC 1026511658. doi:10.1671/0272-4634(2007)27[1:OOTHOD]2.0.CO;2
- Carrano, Matthew T.; Krause, David W.; O'Connor, Patrick M.; Sampson, Scott D. (Setembro de 2009). «Case 3487: Megalosaurus crenatissimus Depéret, 1896 (currently Majungasaurus crenatissimus; Dinosauria, Theropoda): proposed replacement of the holotype by a neotype». The Bulletin of Zoological Nomenclature. 66 (3): 261–264. doi:10.21805/bzn.v66i3.a7
- «Opinion 2269 (Case 3487): Megalosaurus crenatissimus Depéret, 1896 (currently Majungasaurus crenatissimus; Dinosauria, Theropoda): designation of a neotype». The Bulletin of Zoological Nomenclature. 68 (1): 89–90. Março de 2011. doi:10.21805/bzn.v68i1.a7
- Sampson, Scott D.; Witmer, Lawrence M. (2007). «Craniofacial anatomy of Majungasaurus crenatissimus (Theropoda: Abelisauridae) from the Late Cretaceous of Madagascar» (PDF). In: Sampson, Scott D.; Krause, David W. Majungasaurus crenatissimus (Theropoda: Abelisauridae) from the Late Cretaceous of Madagascar. Journal of Vertebrate Paleontology. Col: Society of Vertebrate Paleontology Memoir 8. 27. [S.l.: s.n.] pp. 32–102. doi:10.1671/0272-4634(2007)27[32:CAOMCT]2.0.CO;2
- Grillo, O.N.; Delcourt, R. (2016). «Allometry and body length of abelisauroid theropods: Pycnonemosaurus nevesi is the new king». Cretaceous Research. 69: 71–89. doi:10.1016/j.cretres.2016.09.001
- Mazzetta, Gerardo V.; Fariña, Richard A.; Vizcaíno, Sergio F. (1998). «On the paleobiology of the South American horned theropod Carnotaurus sastrei Bonaparte» (PDF). Gaia. 15: 185–192
- Smith, Joshua B. (2007). «Dental morphology and variation in Majungasaurus crenatissimus (Theropoda: Abelisauridae) from the Late Cretaceous of Madagascar». In: Sampson, Scott D.; Krause, David W. Majungasaurus crenatissimus (Theropoda: Abelisauridae) from the Late Cretaceous of Madagascar. Journal of Vertebrate Paleontology. Col: Society of Vertebrate Paleontology Memoir 8. 27. [S.l.: s.n.] pp. 103–126. doi:10.1671/0272-4634(2007)27[103:DMAVIM]2.0.CO;2
- Carrano, Matthew T. (2007). «The appendicular skeleton of Majungasaurus crenatissimus (Theropoda: Abelisauridae) from the Late Cretaceous of Madagascar». In: Sampson, Scott D.; Krause, David W. Majungasaurus crenatissimus (Theropoda: Abelisauridae) from the Late Cretaceous of Madagascar. Journal of Vertebrate Paleontology. Col: Society of Vertebrate Paleontology Memoir 8. 27. [S.l.: s.n.] pp. 163–179. doi:10.1671/0272-4634(2007)27[163:TASOMC]2.0.CO;2
- Sereno, Paul C.; Wilson, JA; Conrad, JL (2007). «New dinosaurs link southern landmasses in the Mid-Cretaceous». Proceedings of the Royal Society B. 271 (1546): 1325–1330. PMC 1691741
 . PMID 15306329. doi:10.1098/rspb.2004.2692
- Tykoski, Ronald B.; Rowe, Timothy. (2004). «Ceratosauria». In: Weishampel, David B.; Dodson, Peter; Osmólska, Halszka. The Dinosauria Second ed. Berkeley: University of California Press. pp. 47–70. ISBN 978-0-520-24209-8
- Coria, Rodolfo A.; Chiappe, Luis M.; Dingus, Lowell. (2002). «A new close relative of Carnotaurus sastrei Bonaparte 1985 (Theropoda: Abelisauridae) from the Late Cretaceous of Patagonia». Journal of Vertebrate Paleontology. 22 (2): 460–465. doi:10.1671/0272-4634(2002)022[0460:ANCROC]2.0.CO;2
- Rayfield, Emily; Norman, David B.; Horner, Celeste C.; Horner, John R.; Smith, Paula M.; Thomason, Jeffrey J.; Upchurch, Paul. (2001). «Cranial design and function in a large theropod dinosaur». Nature. 409 (6823): 1033–1037. Bibcode:2001Natur.409.1033R. PMID 11234010. doi:10.1038/35059070
- Van Valkenburgh, Blaire; Molnar, Ralph E. (2002). «Dinosaurian and mammalian predators compared». Paleobiology. 28 (4): 527–543. doi:10.1666/0094-8373(2002)028<0527:DAMPC>2.0.CO;2
- D'Emic, M.D.; O'Connor, P.M.; Pascucci, T.R.; Gavras, J.N.; Mardakhayava, E.; Lund, E.K. (2019). «Evolution of high tooth replacement rates in theropod dinosaurs». PLOS ONE. 14 (11): e0224734. Bibcode:2019PLoSO..1424734D. PMC 6880968. PMID 31774829. doi:10.1371/journal.pone.0224734
- Rogers, Raymond R.; Krause, David W.; Curry Rogers, Kristina (2007). «Cannibalism in the Madagascan dinosaur Majungatholus atopus». Nature. 422 (6931): 515–518. Bibcode:2003Natur.422..515R. PMID 12673249. doi:10.1038/nature01532
- O'Connor, Patrick; Ratsimbaholison, Nirina; Felice, Ryan (2016). «Ontogenetic changes in the craniomandibular skeleton of abelisaurid dinosaur Majungasaurus crenatissimus from the Late Cretaceous of Madagascar». Acta Palaeontologica Polonica. 61. doi:10.4202/app.00132.2014
- D'Emic, Michael; Curry Rogers, Kristina; O'Connor, Patrick M. (Outubro de 2016). «Bone histology reveals unusual life history in the theropod dinosaur Majungasaurus crenatissimus from the Latest Cretaceous of Madagascar» (PDF). Journal of Vertebrate Paleontology. 36. 124 páginas
- Rogers, Raymond R.; Krause, David W.; Curry Rogers, Kristina; Rasoamiaramanana, Armand H.; Rahantarisoa, Lydia (2007). Sampson, Scott D.; Krause, David W., eds. «Majungasaurus crenatissimus (Theropoda: Abelisauridae) from the Late Cretaceous of Madagascar». Journal of Vertebrate Paleontology. Society of Vertebrate Paleontology Memoir 8. 27: 21–31. doi:10.1671/0272-4634(2007)27[21:PAPOMC]2.0.CO;2
- Rogers, Raymond R. (2005). «Fine-grained debris flows and extraordinary vertebrate burials in the Late Cretaceous of Madagascar». Geology. 33 (4): 297–300. Bibcode:2005Geo....33..297R. doi:10.1130/G21036.1